Nature|全球视角下的人类着丝粒变异与进化:突变热点与古基因渗入

Nature|全球视角下的人类着丝粒变异与进化:突变热点与古基因渗入

用户8140185
发布于 2026-09-15 10:40:00
发布于 2026-09-15 10:40:00
摘要
着丝粒是确保细胞分裂过程中染色体准确分离的重要染色体区域,但其高度重复的序列历来阻碍了其完整的组装和特征分析。因此,个体、种群和进化背景中着丝粒多样性的全谱至今仍大多未被充分探索。论文通过组装和表征来自5个大陆和28个族群的2110个着丝粒,填补了这一知识空白。利用针对着丝粒定制的生物信息工具,研究识别出变异,包括226个着丝粒单倍型和1870个α卫星高阶重复变体。虽然大多数着丝粒具有单一动粒位点,但发现约6%拥有双动粒位点,少于1%拥有三动粒,这一点通过长读染色质剖析和多代遗传法得到证实。研究还表明,动粒体的位置与着丝粒的底层序列和结构密切相关。为了理解进化变化的本质,将这些着丝粒与人类全基因组参考联盟组装的5,747个着丝粒进行了比较。表明着丝粒的突变率变化为20倍,且部分着丝粒存在古人类渗入的证据。在一个4代、28个成员的家族中验证了这些突变率,并证明动粒位点是着丝体中突变最快的区域。提出了一个模型,揭示着丝粒序列与蛋白质之间的“军备竞赛”,动粒体位点内频繁突变,导致遗传和表观遗传景观的变化,最终加速这些关键区域的进化。
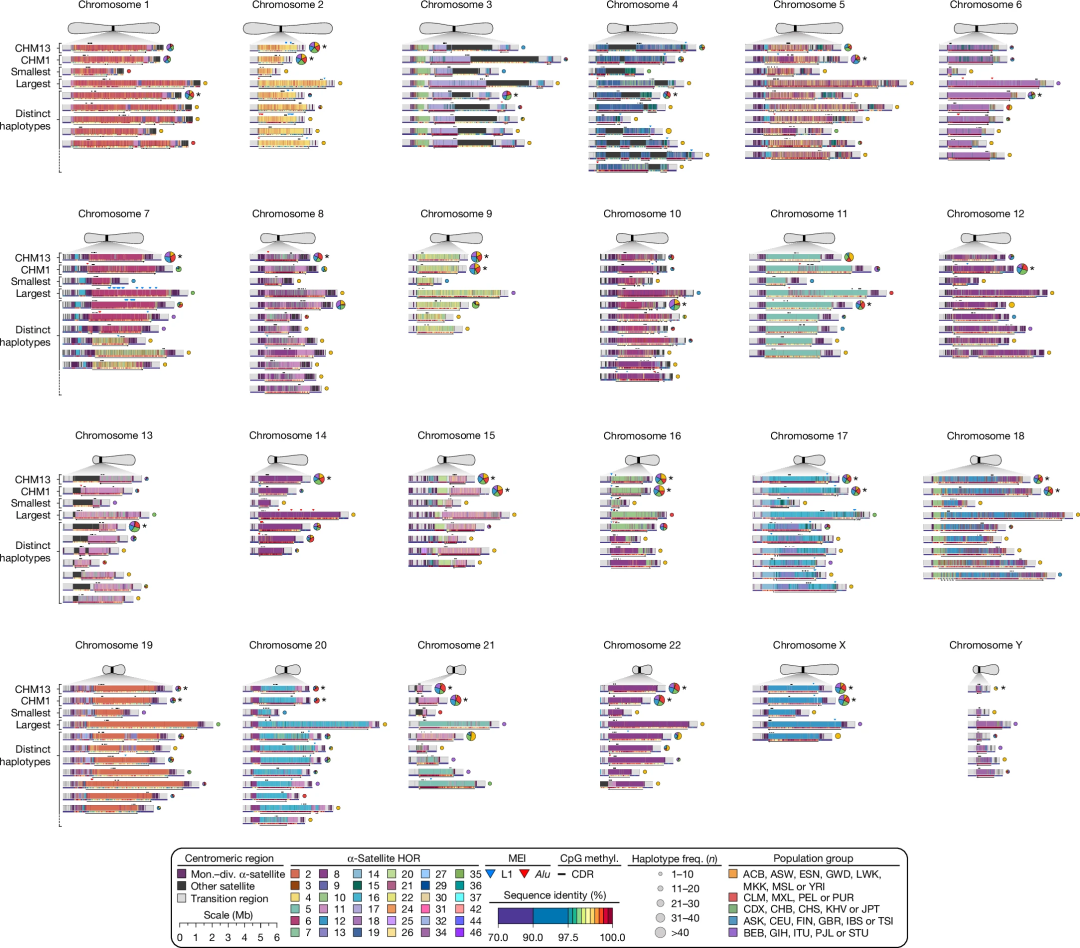
不同人类着丝粒的完整图谱和单倍型频率。来自CHM13的2156个完全组装着丝粒的序列、结构、甲基化模式、局部序列特征和单倍型频。所有着丝粒均可在 https://www.cencyclopedia.com 查看——一个互动且动态的着丝粒浏览器。
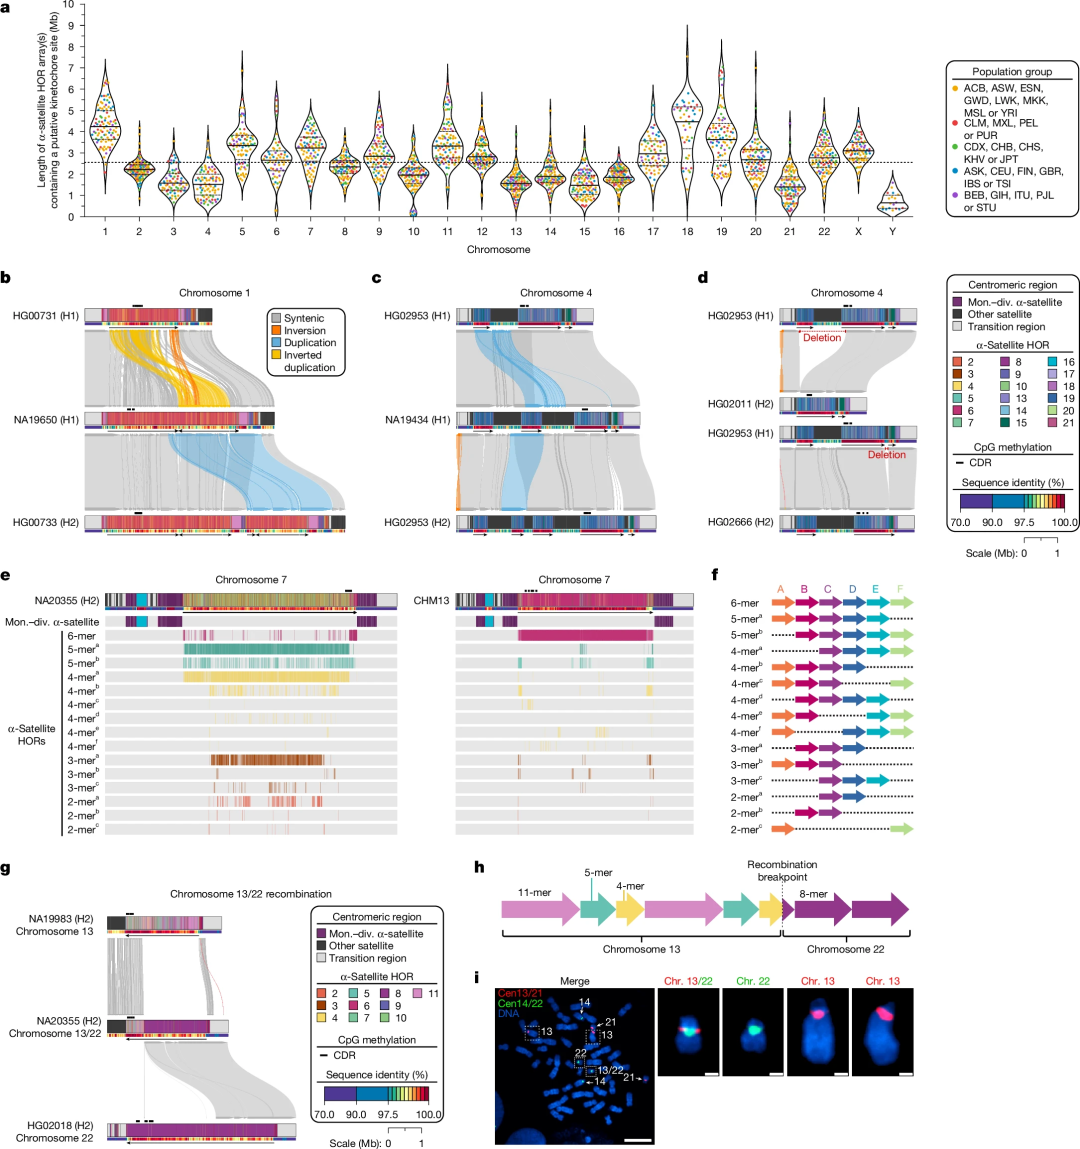
人类着丝粒的复杂序列和结构变异 人类着丝粒通常由一个或多个串联重复的α卫星HOR阵列组成,其中一个阵列作为动粒的所在位置。因此,我们区分了形成动粒和非动粒形成阵列,分别以CDR的存在或缺失来区分,并在数据集中确定了它们的长度。研究发现,形成动粒的阵列平均长度为2.5 Mb,最小的阵列仅为239 kb(在第21号染色体上),最大的阵列长度为7.5 Mb。长度变化最大发生在第6号染色体上,最小和最大相差21.5倍,而绝对长度差异最大出现在第18号染色体,差6.3毫巴。同一个体的动粒体形成阵列长度比较,显示它们平均长度相差仅1.5倍,且<1%的阵列比对应阵列大四倍以上
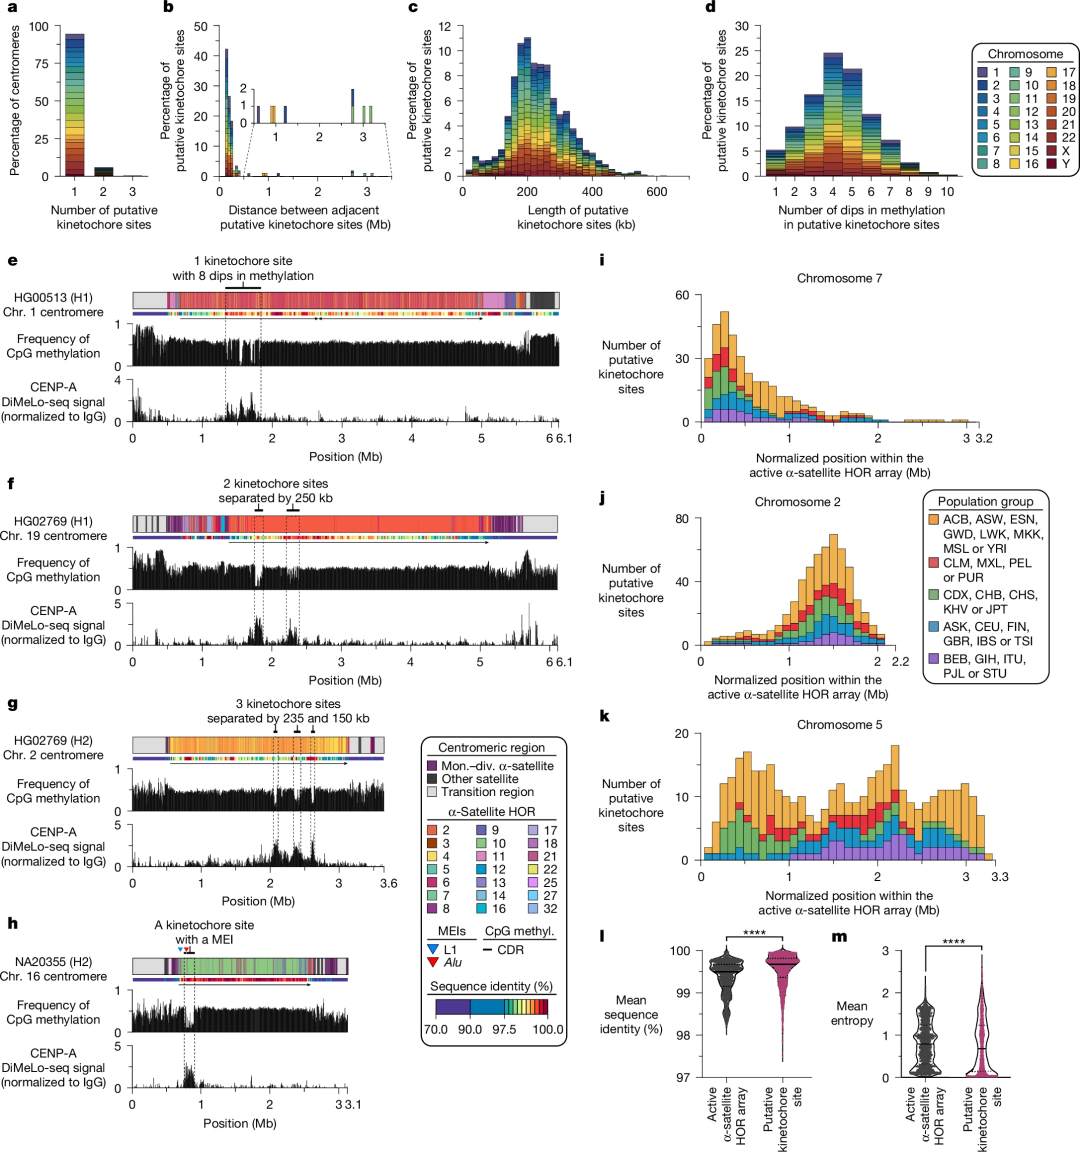
人类着丝粒间假定动粒位点的长度、分布和位置变化 功能性着丝粒在表观遗传学上由两个关键特征定义:含有组蛋白H3变异体CENP-A的核小体以及低甲基化DNA的底层结构域,称为CDRs。这些标记共同建立了独特的染色质基础,用于组装动粒体,这是一种多蛋白复合体,结合纺锤体微管以确保细胞分裂过程中染色体的忠实分离。虽然所有功能性着丝粒都会招募动粒,但对人体着丝粒位置、分布和组织的变异,尤其是跨不同单倍型结构和遗传祖先的变异,仍缺乏清晰理解。利用生成的完整着丝粒组装,试图确定着丝粒内的底层序列和结构如何影响动粒的位置和分布,以及这些结构是否会随群体分层。
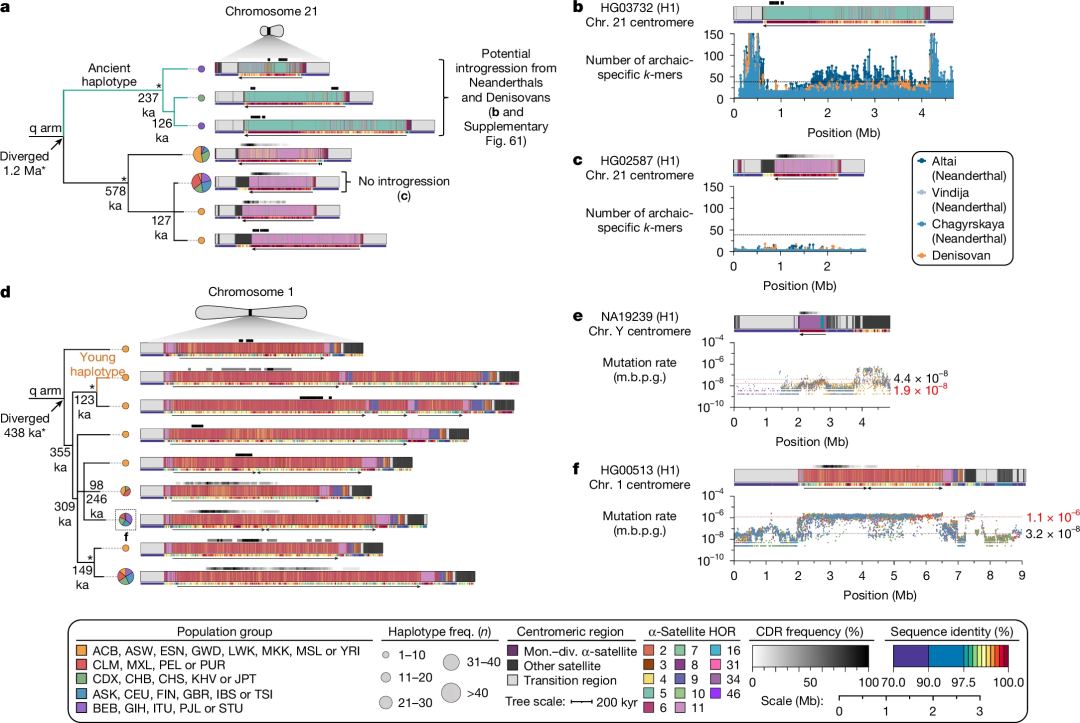
着丝粒内古人类可能的渗入证据 为每个着丝粒构建了最大似然系统发育树,使用黑猩猩序列作为外群,假设黑猩猩与人类的分化时间为620万年。系统发育分析显示,古代和现代的进化事件共同塑造了人类着丝粒结构。研究发现,10号和21号染色体的次要单倍型显著丰富了古人类特异性k-mer,表明这些着丝粒中存在来自尼安德特人和丹尼索瓦人的基因转入DNA。
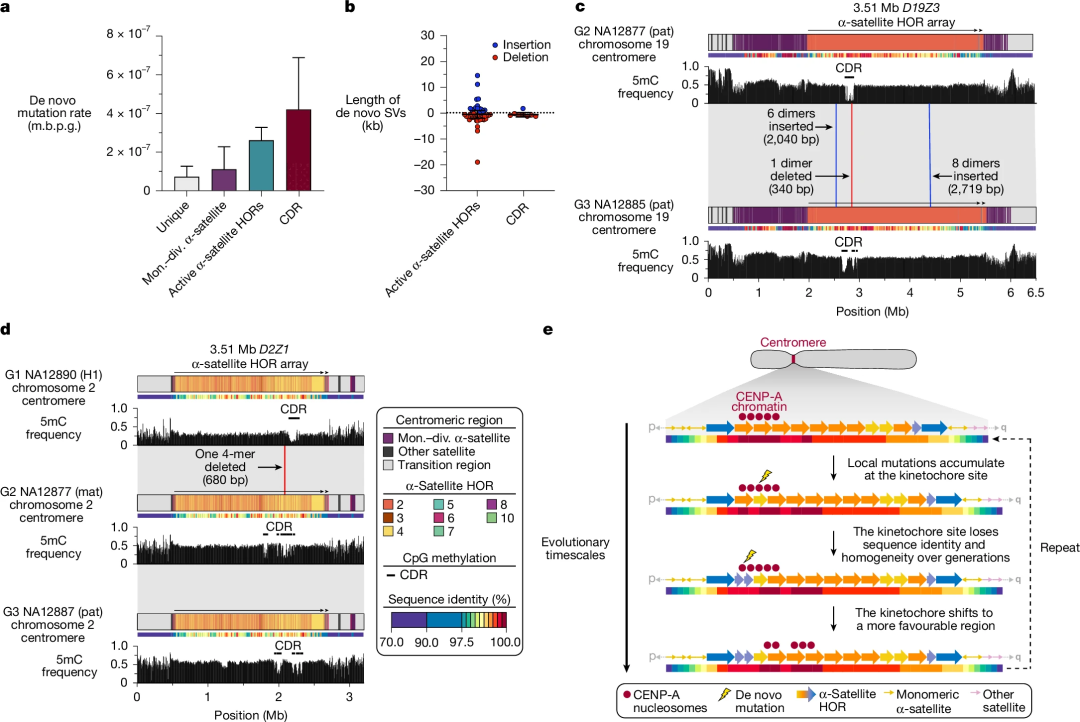
推测动粒位点内加速突变率导致其位置、分布和序列组成在不同世代间发生变化
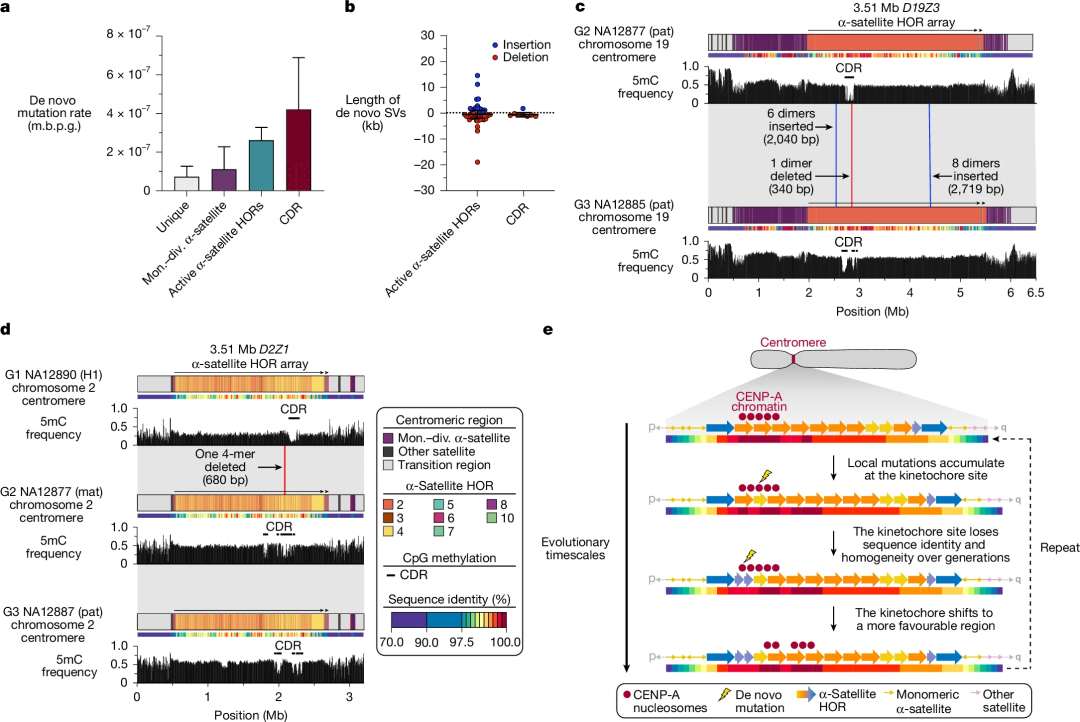
为了验证跨多代着丝粒突变率,研究利用了最近生成的四代谱系谱系(CEPH 1463)中的28个近完整基因组组装。在着丝粒区域内识别了206个新出现的SNV,跨越四代,并通过原始PacBio HiFi和ONT读数以及可能时向下一代传输进行了验证。发现突变率会因底层序列而异。
总结
研究提出了一个着丝粒突变与进化的模型,整合了全球人群中观察到的遗传和表观遗传变异,以及近代人群中的突变景观。在该模型中,发现通过CDR和CENP-A染色质富集标记的假定动粒位点,通常位于着丝粒α卫星HOR阵列中最高度相同且最均匀的序列中。由于其高度的序列同质性和均匀性,该区域容易发生单核苷酸和结构层面的突变,这些突变改变了其位置、分布和长度,并随着时间推移导致遗传和表观遗传景观的变化。未来需要进行基于细胞的检测方法,以识别影响着丝粒多样性的突变过程,以证实这一假说。
数据库
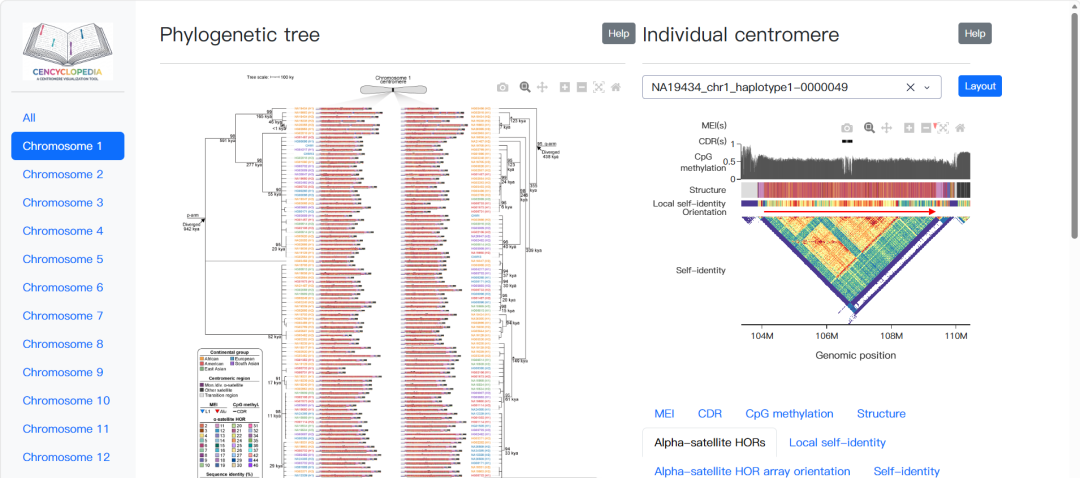
Cencyclopedia 是一款交互式可视化工具,允许我们研究人类着丝粒之间的序列、结构、表观遗传景观及进化关系。
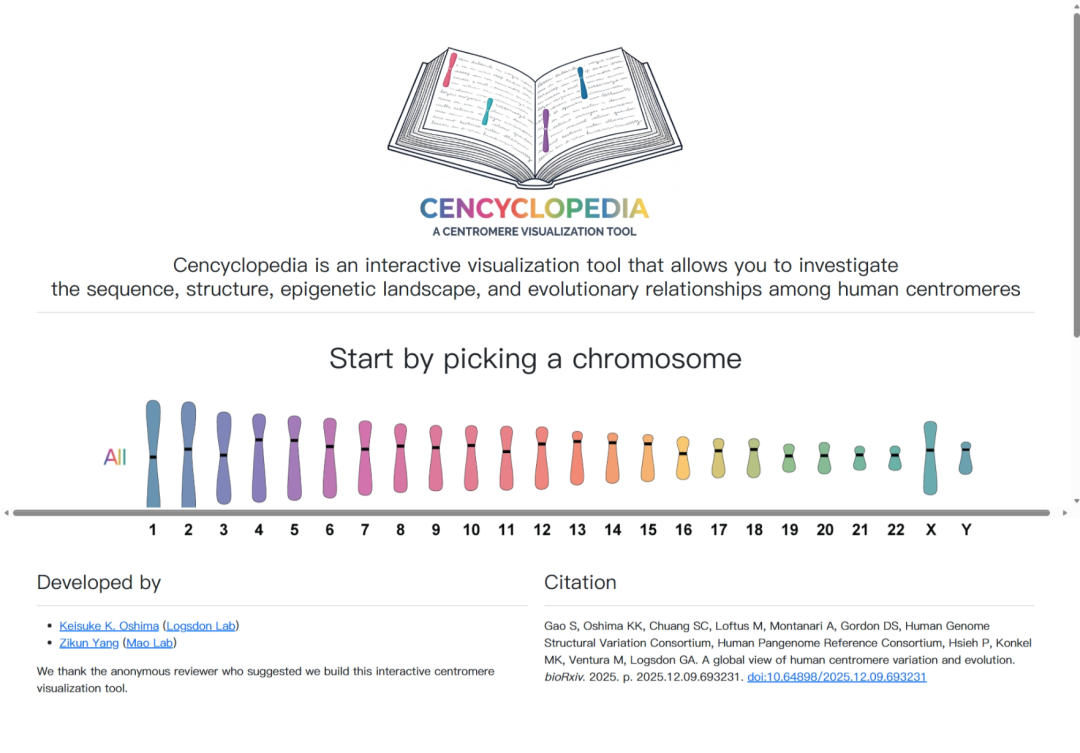
首先选择一条染色体,着丝粒单倍型图的可交互操作,包括通过悬停查看连续体名称、大陆群及性别信息,以及利用Plotly模态栏进行缩放、平移或重置图像。用户只需使用点击、悬停和拖拽等直观操作即可实现数据的详细查阅与视图的灵活调整。
参考
- • https://www.cencyclopedia.com
- • Gao, S., Oshima, K.K., Chuang, SC. et al. A global view of human centromere variation and evolution. Nature (2026). https://doi.org/10.1038/s41586-026-10841-9
本文参与 腾讯云自媒体同步曝光计划,分享自微信公众号。
原始发表:2026-08-02,如有侵权请联系 cloudcommunity@tencent.com 删除
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号